
论文
转座子如何调控基因表达?
研究转座子与基因表达调控时是否感到困惑?
很多科研人员都面临这一难题。
在基因组学快速发展的今天,这不仅是基础问题,更考验你的分子机制理解、数据分析能力和实验设计水平。
转座子如何精准调控基因表达?
本文提供清晰的分子机制解析和实用技术指南,帮你攻克这一研究难关。
转座子与基因表达调控写作指南
写作思路
可以从以下几个方面展开思考:转座子的定义与分类,转座子在基因组中的分布与作用机制,转座子如何通过插入、删除或调控邻近基因影响基因表达,转座子在进化与疾病中的意义。还可以探讨实验技术如CRISPR在转座子研究中的应用,或比较不同物种中转座子调控基因表达的差异。
写作技巧
开头可以引用转座子发现的历史或重要案例,吸引读者兴趣。段落组织上,先介绍基础知识,再深入机制与案例。使用比喻或类比(如将转座子比作“基因组中的游民”)帮助理解。结尾可总结转座子的双重角色(进化动力与疾病诱因),并提出未来研究方向。
核心观点或方向
建议重点突出转座子通过表观修饰(如DNA甲基化)调控基因表达的机制,或分析转座子与癌症、神经退行性疾病的关联。也可探讨转座子驱动的创新基因调控网络如何推动物种适应性进化。
注意事项
避免混淆转座子类型(如Class I与Class II),需明确区分其作用机制。注意术语准确性,如“转座”与“转座事件”的区别。建议通过图表辅助说明转座子插入对启动子/增强子的影响,避免纯文字描述导致的晦涩感。需引用最新研究(如2020年后)以体现前沿性。
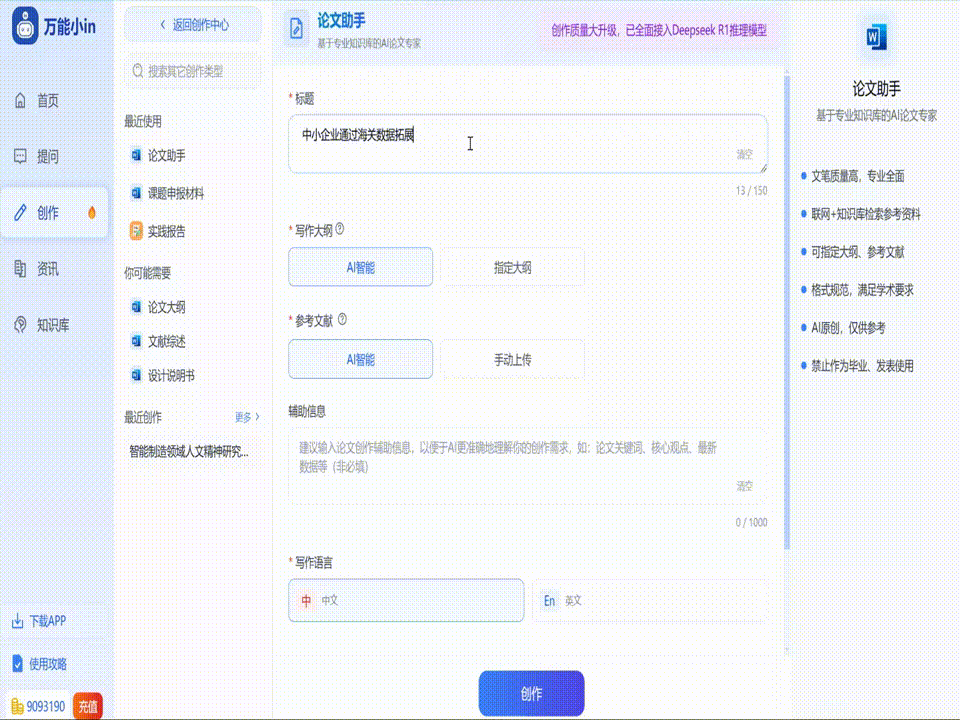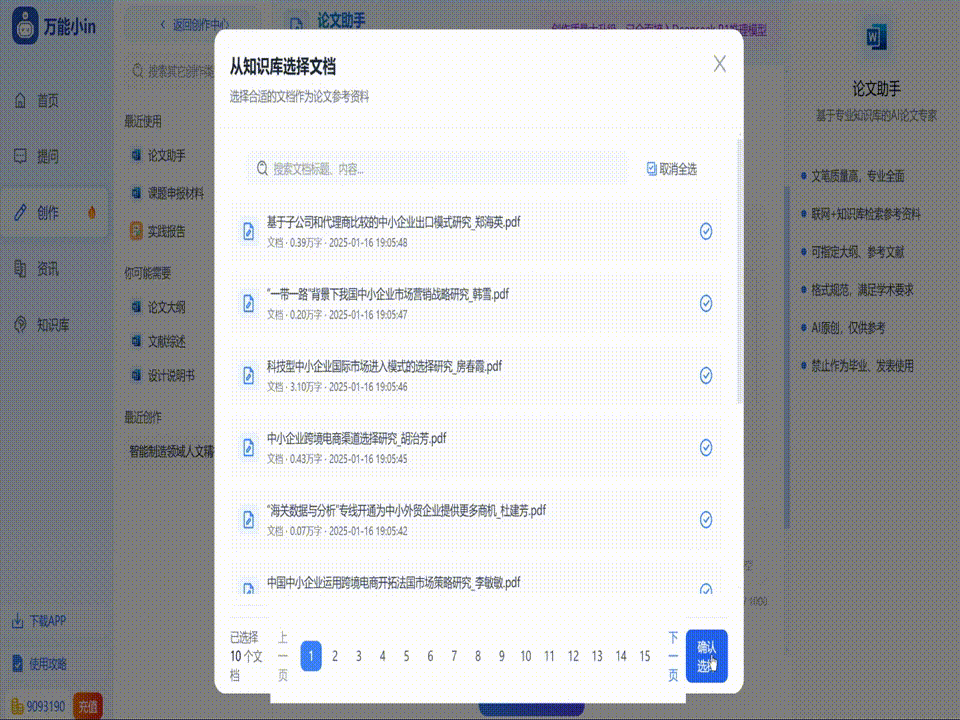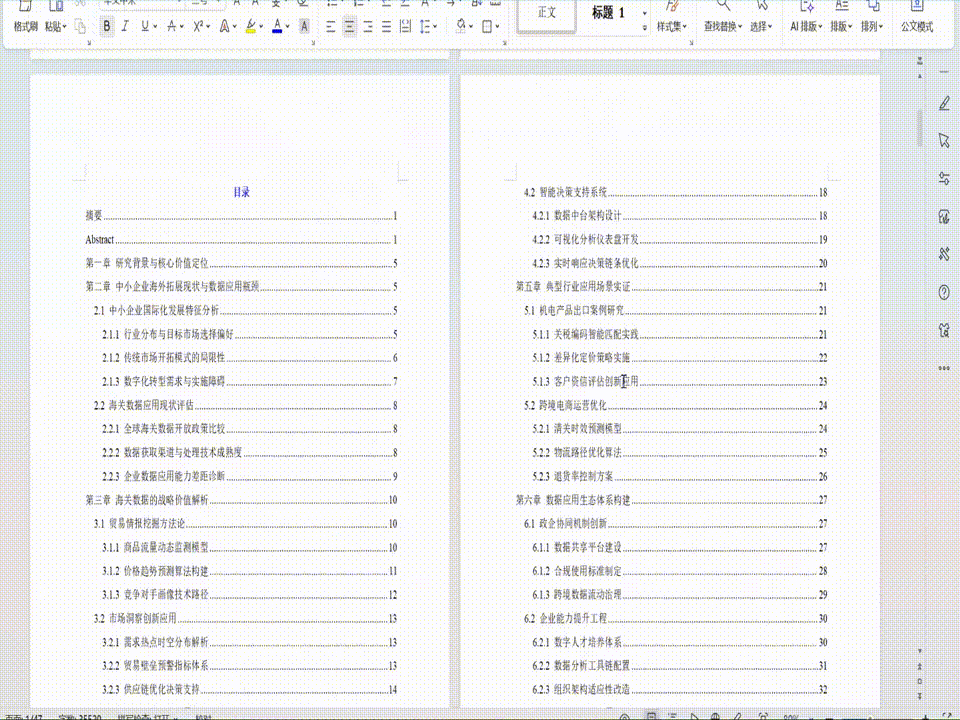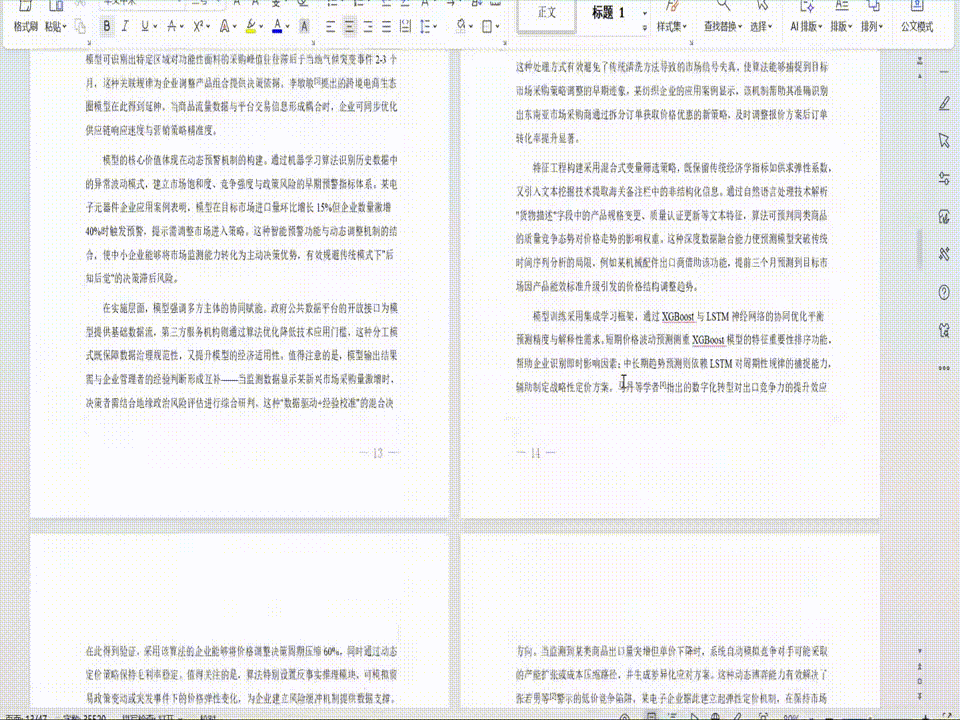
不想看写作指南?可以试试万能小in AI论文助手,一键生成论文初稿,高效省时!
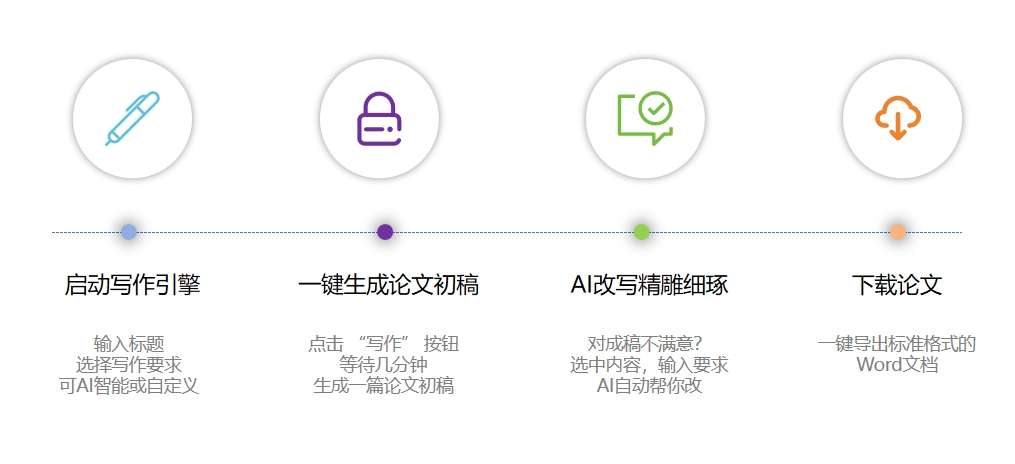
那么轻松就能完成一篇论文初稿,快来体验一下吧~~无需担心论文查重、格式等问题,毕竟万能小in AI写论文是专业的。
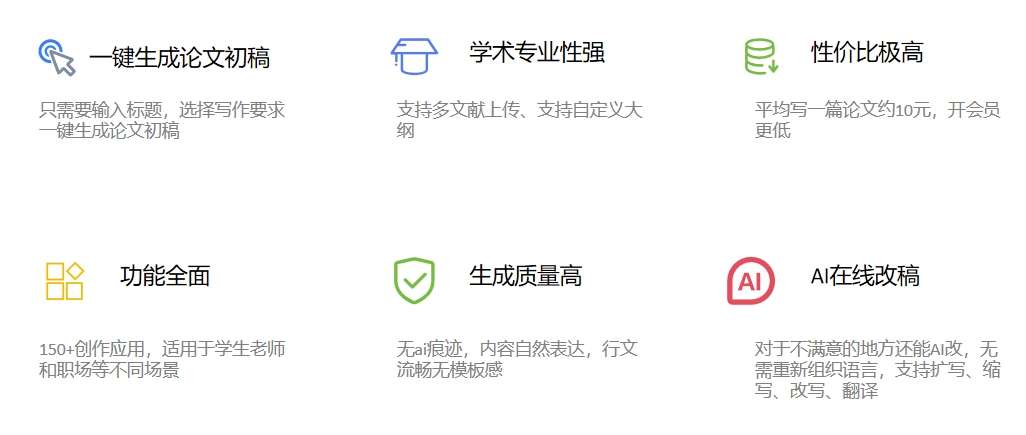
转座子作为基因组中的“跳跃基因”,近年来被发现能通过插入、重组等方式深刻影响基因表达调控。面对这一复杂课题,AI写作工具能快速梳理最新研究进展,帮助科研人员解析转座子如何充当调控开关。无论是构建调控网络还是设计验证实验,AI辅助工具都能为转座子研究提供创新思路,让基因表达调控的探索事半功倍。
转座子在基因表达调控中的作用机制
摘要
转座子作为基因组中可移动的遗传元件,近年来被发现在基因表达调控中发挥着重要作用。本研究系统探讨了转座子的分子特性及其调控基因表达的多层次机制,揭示了这类”基因组暗物质”在生物进化与表观遗传调控中的关键价值。研究发现,转座子通过插入基因调控区域、提供新的启动子或增强子元件、参与染色质结构重塑等多种方式,显著影响宿主基因的时空表达模式。特定类型的转座子能够携带转录因子结合位点,在发育过程中建立动态的基因调控网络。此外,转座子衍生的非编码RNA与表观遗传修饰的相互作用,为理解基因沉默和激活提供了新的视角。这些发现不仅深化了对基因组可塑性的认识,也为疾病相关基因异常表达的机制研究开辟了新思路。未来研究需要进一步解析转座子调控网络的精确分子机制,探索其在生物医学领域的潜在应用价值。
关键词:转座子;基因表达调控;作用机制;基因组;表观遗传
Abstract
Transposable elements (TEs), as mobile genetic elements in genomes, have recently been recognized to play crucial roles in gene expression regulation. This study systematically investigates the molecular characteristics of TEs and their multi-layered mechanisms in regulating gene expression, revealing the pivotal significance of these “genomic dark matters” in biological evolution and epigenetic regulation. The findings demonstrate that TEs significantly influence the spatiotemporal expression patterns of host genes through various pathways, including insertion into gene regulatory regions, provision of novel promoter or enhancer elements, and participation in chromatin remodeling. Certain types of TEs can carry transcription factor binding sites, establishing dynamic gene regulatory networks during development. Furthermore, the interaction between TE-derived non-coding RNAs and epigenetic modifications offers new perspectives for understanding gene silencing and activation. These discoveries not only deepen the understanding of genome plasticity but also open new avenues for investigating the mechanisms underlying aberrant gene expression in diseases. Future research should further elucidate the precise molecular mechanisms of TE regulatory networks and explore their potential applications in biomedical fields.
Keyword:Transposable Elements; Gene Expression Regulation; Mechanism; Genome; Epigenetics;
目录
第一章 研究背景与目的
基因组可塑性是生物进化与适应的重要基础,而转座子作为其中最具活力的遗传元件,近年来在基因表达调控领域引发了革命性认知。过去十年间,高通量测序技术的突破性进展揭示,曾被视作“基因组暗物质”的转座子不仅广泛存在于真核生物基因组中,更通过多种分子机制参与基因网络的动态调控。2025年最新研究表明,哺乳动物基因组中近半数的调控元件可能起源于转座子衍化,这一发现彻底改变了对其生物学功能的传统界定。
转座子研究的范式转变始于二十一世纪初,随着表观遗传学调控网络的解密,科学家逐渐认识到这类可移动元件能够通过插入诱变、表观修饰交互、非编码RNA生成等途径重塑宿主基因的表达谱。特别是在发育生物学领域,转座子携带的转录因子结合位点被证实能够构建时空特异的调控回路,这为理解胚胎发育中的基因程序切换提供了关键线索。近期《自然》期刊系列研究进一步指出,转座子介导的染色质开放状态变化与神经退行性疾病、癌症等病理过程存在显著关联。
本研究的核心目的聚焦于系统解析转座子调控基因表达的多层次机制。首先需要阐明不同类型转座子的分子特性如何决定其调控潜能,包括LTR与Non-LTR转座子在顺式作用元件携带能力上的分化。其次将深入探讨转座子与宿主基因组互作的动态平衡机制,特别是表观遗传修饰在抑制转座子移动性与利用其调控功能之间的精妙协调。最终目标是建立转座子参与基因网络调控的普适性模型,为开发基于转座子工程的基因治疗策略提供理论基础。在当前精准医学快速发展的背景下,这项研究对于揭示疾病相关基因异常表达的表观遗传学根源具有重要价值。
第二章 转座子的基本特性与分类
2.1 转座子的结构与功能特征
转座子的结构组成与其功能特征密切相关,这种关联性构成了其调控基因表达的基础框架。从分子结构来看,典型的转座子包含保守的核心功能域和可变的调控元件区,这种模块化设计使其能够在基因组中实现精准定位与功能发挥。核心功能域通常编码转座酶或其他移动相关蛋白,这些蛋白通过识别转座子末端的反向重复序列(IR)介导切割与插入过程。值得注意的是,转座子两端的结构特征存在显著分化:LTR型转座子具有典型的长末端重复序列,这使其能够通过逆转录机制完成转座;而非LTR型转座子则依赖靶点引物反转录机制,其末端多含有富含腺嘌呤的尾序列[1]。
功能特征方面,转座子表现出多层次的调控潜能。其携带的顺式调控元件可被宿主细胞转录机器识别,从而形成嵌合转录本或独立转录单元。例如,某些LTR转座子的启动子区域含有TATA框和转录因子结合位点,这使其能够在特定组织或发育阶段激活邻近基因的表达。近期研究揭示,转座子的这种特性已被宿主基因组选择性利用,形成了进化上保守的调控网络节点。PiggyBac转座系统作为典型代表,其高效稳定的转座特性已被成功应用于基因功能研究,如在BEAS-2B细胞系中实现NLRC5基因的持续过表达[2]。
在三维基因组层面,转座子的插入能够改变局部染色质拓扑结构。通过携带染色质开放区域或绝缘子元件,转座子可以重新定义染色质相互作用域,进而影响远端基因的调控。这种结构重塑功能在鸟类等具有紧凑基因组的物种中表现尤为突出,转座子的选择性保留可能与其维持基因组稳定性的特殊机制相关[1]。同时,转座子衍生的非编码RNA通过与染色质修饰复合物相互作用,可建立跨染色体的表观遗传调控网络。这种RNA介导的调控模式不依赖于DNA序列改变,为基因表达的快速可塑性调控提供了分子基础。
功能分化方面,不同类型转座子展现出明显的时空特异性。自主转座子具有完整的移动装置,可在发育早期活跃转座;而非自主转座子则依赖其他转座子提供的转座酶,多在后生组织中发挥调控作用。这种功能互补性使得转座子系统能够响应环境刺激和发育信号,在维持基因组稳定性的同时实现动态调控。转座子的这些结构功能特征共同构成了其在基因表达调控中的分子基础,为理解基因组可塑性与生物适应性进化提供了关键线索。
2.2 转座子的分类及其进化意义
转座子依据其转座机制与序列特征可划分为两大类:以长末端重复序列为特征的LTR转座子和非长末端重复的Non-LTR转座子。这种分类不仅反映了转座子分子结构的本质差异,更与其在基因组进化中的功能分化密切相关。LTR转座子通过逆转录机制实现转座,其典型结构包含两个同向重复的LTR序列,中间编码gag和pol等逆转录病毒同源基因。这类转座子在植物基因组中表现尤为活跃,西北农林科技大学的研究证实,蔷薇科植物中LTR-RTs的近期插入事件与抗逆性基因的调控存在显著关联[3]。相比之下,Non-LTR转座子依赖靶点引物反转录机制,其转座过程不形成RNA中间体,在哺乳动物基因组中占据主导地位。
从进化动力学角度,转座子可分为自主型与非自主型两大功能类别。自主型转座子具备编码转座所需全部蛋白的能力,如转座酶或逆转录酶,其转座活性直接受宿主表观遗传调控网络的约束。正如程毅在研究中所指出,“特定非编码RNA可通过调控组蛋白修饰状态影响转座子的表观遗传沉默”[4]。非自主型转座子则缺失功能性转座酶基因,需依靠其他转座子提供的转座酶完成移动。这种功能互补性促成转座子系统形成分级调控网络,在维持基因组稳定性与促进遗传多样性之间取得平衡。值得注意的是,自主型与非自主型转座子常呈现协同进化特征,例如某些DNA转座子家族中,非自主成员通过保留反向重复序列获得与自主成员相同转座特异性的现象。
转座子的分类体系还体现在其转座机制的多样性上。复制型转座通过保留原始拷贝产生新插入位点,导致基因组规模扩张;非复制型转座则通过“剪切-粘贴”机制改变位置,维持基因组大小恒定;保守型转座作为特殊亚类,其转座过程伴随精确的DNA链交换。这些机制差异直接影响了转座子在物种进化中的贡献模式。以PiggyBAC转座系统为例,其独特的“剪切-粘贴”特性及无足迹 excision 能力,已被广泛应用于转基因动物模型的构建,充分展示了转座子工程在生物医学研究中的实用价值。
进化意义层面,转座子的分类特征反映了其与宿主基因组的协同适应过程。LTR转座子在植物中频繁参与抗逆相关基因网络的构建,而Non-LTR转座子则在哺乳动物神经发育中发挥关键作用。花龙团队的研究发现,转座子介导的表观遗传调控可能影响TGF-β等关键信号通路的活性[5],这一发现为理解转座子在复杂性状进化中的作用提供了新视角。转座子的分类多样性还体现在时空表达模式的差异:古老转座子多被宿主基因组驯化为稳定的调控元件,而年轻转座子则保持较高的转座活性,共同构成基因组动态调控的基础架构。
转座子分类的系统性研究不仅深化了对基因组结构复杂性的认识,更为理解生物适应性进化提供了独特窗口。不同类型转座子在进化过程中形成的功能特化,使它们能够以差异化方式参与基因表达调控网络的塑造,这种多层次、动态的互作模式正是生物体应对环境变化的重要遗传基础。
第三章 转座子在基因表达调控中的具体作用机制
3.1 转座子对启动子和增强子活性的影响
转座子通过提供顺式调控元件显著重塑宿主基因的转录调控格局,其对启动子和增强子活性的修饰作用已成为理解基因组动态调控的核心机制之一。在真核生物基因组中,转座子衍生的启动子元件能够替代或补充原有启动子功能,这种替代可能通过两种途径实现:一是转座子携带完整的核心启动子元件(如TATA框和起始子序列),直接启动下游基因的转录;二是转座子序列与宿主原有启动子区域形成嵌合结构,产生具有新调控特性的杂合启动子。Jianchao Hu在猪基因组研究中发现,移动元件变异(MEVs)可通过改变转录因子结合位点的空间分布影响邻近基因的表达模式[6],这一现象在组织特异性表达基因中尤为显著。
增强子活性的调控方面,转座子展现出更复杂的时空特异性。特定类型的LTR转座子含有密集的转录因子结合位点集群,这些位点在三维基因组空间中可形成远程染色质环,激活数十kb外的靶基因。例如,哺乳动物胚胎干细胞中,ERVK型LTR转座子衍生的增强子被证实参与多能性维持网络的构建,其活性受DNA甲基化和组蛋白修饰的动态调控。值得注意的是,转座子介导的增强子激活具有显著的物种差异性,这可能解释了为何同源基因在不同物种中呈现分歧的表达模式。花龙团队关于TGF-β1基因调控的研究揭示,启动子区转座子插入可能通过改变DNA甲基化模式影响信号通路的活性[5],这种表观遗传重编程机制在疾病发生发展中具有潜在重要性。
从分子机制角度看,转座子对启动子/增强子的影响涉及多层次的相互作用。在序列水平,转座子通过引入新的转录因子结合模块(如NF-κB或AP-1位点)改变调控区域的结合特性;在表观遗传层面,转座子衍生的CG岛可能成为DNA甲基化传播的种子位点,进而调控局部染色质状态。程毅关于LncRNA AL133415.1的研究表明,非编码RNA可通过调控氧化应激反应相关基因的启动子活性影响细胞功能[4],这提示转座子衍生的非编码RNA可能通过类似机制参与启动子活性的远程调控。特别值得关注的是,某些古老的转座子序列已被宿主基因组完全驯化,成为组成型启动子的核心部件,如哺乳动物中约8%的组成型启动子含有转座子起源序列。
环境响应性调控是转座子影响启动子/增强子活性的另一重要特征。在植物中,LTR转座子经常位于胁迫响应基因的上游,其携带的应激反应元件(如ABRE或DRE)使邻近基因能够快速响应环境变化。类似的,在哺乳动物免疫系统中,某些Alu元件含有干扰素刺激反应元件(ISRE),可在病毒感染时激活邻近基因的表达。这种将环境信号与基因表达耦合的机制,可能代表了宿主基因组利用转座子实现快速适应的进化策略。转座子的这种“预适应”特性使其成为生物体应对环境挑战的重要遗传资源。
从进化视角看,转座子对启动子和增强子的贡献呈现明显的世代累积效应。年轻转座子往往通过插入突变直接改变调控序列,而古老转座子则更多通过表观遗传驯化间接影响染色质状态。这种时相差异导致同一转座子家族在不同进化时期对基因调控网络的贡献呈现动态变化。值得强调的是,转座子衍生的调控元件并非独立作用,而是与宿主原有调控系统形成复杂的互作网络,这种“双轨制”调控模式大大增强了基因表达调控的灵活性和可塑性,为生物适应复杂多变的环境提供了遗传基础。
3.2 转座子介导的非编码RNA调控网络
转座子衍生的非编码RNA构成了基因组调控网络中一类特殊的分子媒介,通过多重机制参与基因表达的精细调控。这类RNA分子主要来源于转座元件的转录产物,经加工后形成具有调控功能的小RNA或长链非编码RNA,在表观遗传修饰和转录后调控层面发挥重要作用。研究发现,转座子序列在非编码RNA中的富集程度显著高于编码区域,暗示其在RNA层面可能具有独特的调控潜能[1]。
在短链非编码RNA层面,转座子衍生的piRNA表现尤为突出。这类长度约24-31nt的RNA分子通过与PIWI蛋白家族成员结合,形成RNA-蛋白质复合物,特异性地识别并沉默同源转座子序列。这一过程不仅限制了转座子的移动性,更重要的是建立了跨代遗传的表观记忆系统。程毅在研究非编码RNA调控机制时指出,“特定非编码RNA可通过调控组蛋白修饰状态影响基因的表达活性”[4],这一发现为理解piRNA介导的转座子沉默机制提供了新视角。piRNA系统的独特之处在于其能够识别新生转座子转录本,通过指导DNA甲基转移酶和组蛋白修饰酶定位到靶位点,实现转录水平的沉默效应。
长链非编码RNA(lncRNA)同样在转座子介导的调控网络中扮演关键角色。转座子序列常嵌入lncRNA的启动子区域或外显子中,赋予这些RNA分子独特的调控特性。例如,某些lncRNA通过转座子衍生的反向重复序列形成稳定的二级结构,作为分子支架募集染色质重塑复合物。翟兰在构建ceRNA调控网络时发现,“mRNA与非编码RNA之间通过共享miRNA反应元件形成复杂的互作网络”[7],这一机制同样适用于转座子衍生的lncRNA。值得注意的是,转座子序列的插入可能改变lncRNA的亚细胞定位模式,使其从核内调控转向胞质调控,从而扩展其功能多样性。
从作用机制看,转座子衍生的非编码RNA主要通过三种途径调控基因表达:其一,作为向导RNA募集表观遗传修饰酶至特定基因组位点,改变局部染色质状态;其二,作为竞争性内源RNA(ceRNA)吸附miRNA,解除其对靶mRNA的抑制;其三,通过形成RNA-DNA杂交体(R-loop)干扰转录延伸过程。这些机制在发育和疾病过程中呈现动态变化,例如在神经分化期间,特定转座子衍生的lncRNA表达水平发生显著波动,可能参与神经元特异性基因程序的建立。
进化角度而言,转座子与非编码RNA的协同进化塑造了物种特异的调控网络。古老转座子序列在lncRNA中的保留率显著高于年轻转座子,暗示宿主基因组倾向于驯化那些已证明调控价值的转座子元件。这种驯化过程可能通过渐进式的突变积累实现,逐渐优化转座子序列与非编码RNA功能的匹配度。特别值得注意的是,某些转座子家族在特定物种的非编码RNA中呈现显著富集,反映了这些元件在谱系特异调控网络构建中的特殊贡献。
疾病关联方面,转座子衍生的非编码RNA异常表达与多种病理过程相关。在神经退行性疾病中,piRNA通路的功能障碍可能导致转座子异常激活,引发基因组不稳定性和神经元损伤;而在癌症中,转座子衍生的lncRNA可能通过劫持转录调控网络促进肿瘤发生。这些发现不仅拓展了对疾病机制的认识,也为开发基于非编码RNA的诊疗策略提供了新思路。随着2025年单细胞多组学技术的发展,转座子非编码RNA网络的时空动态特征及其在精准医学中的应用价值正成为研究热点。
转座子介导的非编码RNA调控体现了基因组可塑性与调控复杂性的完美结合。这类网络既保留了转座子固有的序列多样性和移动潜能,又融入了宿主基因组的精细调控机制,形成了独特的“移动-调控”双功能体系。未来研究需要进一步解析转座子序列与非编码RNA功能的精确对应关系,以及这些网络在跨代遗传和环境适应中的演化轨迹。
第四章 研究结论与未来展望
本研究系统揭示了转座子作为基因组动态调控元件的多层次作用机制,为理解基因组可塑性与基因表达调控的复杂关系提供了新视角。主要结论可归纳为以下三个方面:首先,转座子通过提供顺式调控元件(如启动子、增强子)和改变染色质三维结构,显著影响宿主基因的时空表达模式。LTR转座子与Non-LTR转座子在调控功能上呈现明显分化,前者更多参与环境响应性调控,后者则倾向于影响基础转录过程。其次,转座子衍生的非编码RNA(包括piRNA和lncRNA)构成了一套独特的表观遗传调控系统,通过RNA-DNA互作、染色质重塑和竞争性结合等机制实现基因表达的精细调控。最后,转座子与宿主基因组展现出的协同进化特征,表明这类移动元件已深度整合至生物体的发育与适应策略中。
当前研究仍存在若干亟待解决的关键问题。在机制解析层面,需要进一步明确转座子调控网络的精确分子开关,特别是转座子活性与表观遗传修饰(如DNA羟甲基化、组蛋白变体沉积)之间的因果关系。单细胞多组学技术的突破为在时空尺度上解析转座子调控的动态过程提供了新机遇,但如何区分转座子的主动调控效应与被动伴随现象仍具挑战性。遗传操作技术的局限也制约了功能性验证的深度,现有转座酶特异性抑制剂(如逆转录酶抑制剂)往往缺乏家族特异性,难以精确操纵特定转座子亚群的活动。
未来研究应重点关注三个发展方向:技术层面,开发基于CRISPR-dCas9的转座子表观基因组编辑工具,实现在内源环境下对转座子调控元件的定点操控与功能验证;理论层面,建立整合转座子活动与基因调控网络的数学模型,量化预测转座子插入对转录输出的影响权重;应用层面,探索转座子调控模块在合成生物学中的工程化应用,如构建环境响应型基因回路或可编程的表观遗传记忆系统。2025年发布的AlphaFold3等AI预测工具,为解析转座酶三维结构及设计靶向药物提供了新的技术路径。
医学转化领域,亟需建立转座子活性与疾病关联的标准化评估体系。基于液体活检技术开发转座子表达谱分析 panel,可能为神经退行性疾病和癌症的早期诊断提供新型分子标志物。农业应用方面,蔷薇科植物中发现的转座子-抗逆基因关联规律,为设计转座子驱动的分子育种策略提供了理论依据。值得注意的是,随着基因治疗技术的快速发展,优化转座子系统(如PiggyBac)的定向整合效率与安全性评估,将成为基因药物递送载体研发的重要方向。
本研究的理论价值不仅在于拓展了对“基因组暗物质”功能的认识,更在于提供了理解生物复杂性状起源的新范式。转座子调控网络的发现,将经典的“中心法则”延伸至可移动遗传元件与宿主基因组的动态互作层面,为进化发育生物学(Evo-Devo)研究注入了新的活力。未来跨学科研究需要整合古基因组学、表观遗传学和系统生物学方法,全面揭示转座子在生命演化长河中的创造性作用。这些探索不仅将深化对生命本质的理解,也可能为应对气候变化引发的生物适应性挑战提供创新解决方案。
参考文献
[1] Bo-Ping Li.Transposable elements shape the landscape of heterozygous structural variation in a bird genome[J].《Zoological Research》,2025,(1):75-86.
[2] 孙丹妮.利用PiggyBac转座子技术构建NLRC5基因过表达BEAS-2B细胞系及其功能研究[J].《空军军医大学学报》,2025,(4):526-532.
[3] Liyong Sun.B-class floral homeotic gene MapoAPETALA3 may play an important role in the origin and formation of multi-tepals in Magnolia polytepala[J].《Horticultural Plant Journal》,2025,(2):891-905.
[4] 程毅.LncRNA AL133415.1在SH-SY5Y细胞中对Klotho基因表达调控作用[J].《脑与神经疾病杂志》,2025,(6):377-383.
[5] 花龙.信号通路(TGF-β1)关键基因脱氧核糖核酸甲基化在骨关节炎发生发展中的作用及调控机制研究[J].《中文科技期刊数据库(引文版)医药卫生》,2025,(3):190-197.
[6] Jianchao Hu.Construction of the porcine genome mobile element variations and investigation of its role in population diversity and gene expression[J].《Journal of Animal Science and Biotechnology》,2025,(1):59-75.
[7] 翟兰.TPPP2基因在保山猪睾丸中的表达、转录调控及潜在的生物学作用机制[J].《福建农林大学学报(自然科学版)》,2025,(3):325-334.
通过转座子与基因表达调控的写作指南和范文,您已掌握精准传递科学概念的技巧。不妨尝试从转座子活性调控案例开始练习,结合本文框架撰写您的研究内容,相信您很快能创作出兼具专业性与可读性的优质论文。

 下载此文档
